Mitglied werden in der AGÖF
AGÖF-zertifizierte:r Sachverständige:r für Gebäudeschadstoffe
Seminar mit Prüfung am 10. und 11. Februar 2027
Im Shop: AGÖF-Geruchsleitfaden
Stellungnahme der AGÖF zur MVV TB
MVVTB (08/2025) greift den neuen Innenraumgefahrenwert des AIR für PCB auf
Riechen, Fühlen, Reagieren: Die unsichtbare Verbindung von Geruch und Stress
Kirsten Sucker, DGUV
24.09.2026, Bremen
Beim Sehen, Hören, Tasten und Schmecken werden alle Signale zuerst im Thalamus – dem „Tor zum Bewusstsein“ – gefiltert, bevor sie die Großhirnrinde erreichen. Nur beim Riechen gehen die Signale direkt in die Riechrinde und das Limbische System. Gerüche und Emotionen werden strukturell und funktional in denselben neuroanatomischen Arealen verarbeitet. Daher gehen renommierte Geruchsforscherinnen wie Dr. Rachel Herz heute so weit zu sagen: „Riechen ist Emotion“ (Herz, 2026).
Riechen ist Emotion
Man liest immer wieder „Geruchsmoleküle wandern direkt ins Limbische System“. Die Geruchsinformation – ja, die Moleküle selbst – nein.
Die Geruchswahrnehmung beginnt in der Nasenhöhle. Dort binden Moleküle an spezifischen Rezeptoren auf den Zilien von Riechsinneszellen (Neuronen) in der Nasenschleimhaut und lösen elektrische Signale, sogenannte Rezeptorpotentiale, aus. Sind die elektrischen Signale stark genug, bildet sich ein Aktionspotential aus, das über den Riechnerv (Nervus olfactorius) durch den Schädelknochen (Siebbeinplatte) zum Riechkolben (Bulbus olfactorius) weitergeleitet wird. Jedes Nasenloch ist mit einem eigenen Riechkolben verbunden.
Im Riechkolben findet in den sogenannten Glomeruli eine Umschaltung auf Mitral- und Büschelzellen statt. An einem einzelnen Glomerulus sind rund 25 Mitral- und 50 Büschelzellen beteiligt. In einem Glomerulus laufen die Informationen von etwa 1.000 bis 25.000 Riechsinneszellen mit exakt demselben Rezeptortyp zusammen. Es gibt etwa 350 verschiedene Rezeptortypen. Zum Vergleich, für das Sehen sind vier Rezeptortypen erforderlich. Die Rezeptorspezifität und die starke Konvergenz sind für die extreme Signalverstärkung auf der Ebene des Riechkolbens und somit für die hohe Empfindlichkeit des Geruchssinns verantwortlich. Mithilfe von hemmenden Interneuronen werden störende Hintergrundsignale unterdrückt, was eine Kontrastverstärkung ermöglicht und somit die gute Unterscheidbarkeit von Geruchsnuancen gewährleistet. Im Riechkolben entsteht auf der Basis von unterschiedlich stark aktivierten Glomeruli ein komplexes, synchronisiertes und dynamisches Aktivierungsmuster in den vier Dimensionen von Raum und Zeit (Doty, 2025).
Vom Riechkolben aus ziehen ein Großteil der Axone der Mitral- und Büschelzellen über den Riechstrang (Tractus olfactorius) direkt und ohne vorherige Verschaltung im Thalamus zur Riechrinde (primärer olfaktorischer Kortex) (Smith & Bhatnagar, 2019; Cleland & Linster, 2019; Fjaeldstad et al., 2021; Kehl et al., 2024).
Das primäre Riechzentrum besteht aus:
- Piriformer Kortex: Mustererkennung von Geruchsobjekten („Es riecht“) nach der 5-Prozent Regel (siehe unten).
- Amygdala (Mandelkern): emotionale Bewertung.
- Entorhinalkortex (Cortex entorhinalis): „Tor zum Gedächtnis“ - Verbindung zum Hippocampus und Verknüpfung von Geruchsobjekten mit räumlichen, zeitlichen und biographischen Erinnerungen ("Proust-Phänomen").
- Riechhügel (Tuberculum olfactorium): Verbindung mit dem Belohnungssystem (Nucleus accumbens), zustandsgesteuerte Geruchsverarbeitung (Beispiel: Hunger vs. Sättigung, siehe unten)
- Septumregion (Area septalis): Verbindung von Geruch mit Erinnerung, Emotion und vegetativen Reaktionen wie z. B. Speichelfluss, Magensaftsekretion, Blutdruck, Herzschlag, Übelkeit und Würgereiz
- Verbindung zum Riechkolben der anderen Seite: Geruchsinformationen aus beiden Nasenlöchern miteinander abgleichen („Stereo-Riechen“).
Die 5-Prozent Regel:
Ein starkes hemmendes Netzwerk von Neuronen sorgt dafür, dass nur die Signale der obersten fünf Prozent der am stärksten aktivierten Neurone durchgelassen werden, während der Rest als Hintergrundaktivität abgeschaltet wird. Das so entstehende Muster ist über einen weiten Bereich hinweg robust gegenüber Veränderungen in der Konzentration und in der Zusammensetzung aus Einzelsubstanzen. Das spart Energie, denn Aktionspotentiale verbrauchen viel biochemische Energie (ATP). Es entstehen stabile und trennscharfe Muster, die weitergeleitet werden (Dasgupta et al., 2017).
Auf diese Weise können wir beispielsweise schnell zwischen Orange (R-Limonen + Sinesal) und Zitrone (R-Limonen + Citral) unterscheiden, obwohl beide Gerüche zu einem großen Teil aus demselben chemischen Baustein (R-Limonen = Hintergrundrauschen) bestehen. Es reichen wenige Leitsubstanzen aus, um einen Geruch zu erkennen. Fehlt jedoch eine entscheidende Leitsubstanz, wird der Geruch entweder gar nicht erkannt oder der Geruch riecht anders als erwartet und wird als „künstlich, chemisch oder verdorben“ empfunden.
Reine chemische Verbindungen, wie z. B. das Bananenaroma Isoamylacetat kommen in der Natur kaum vor. Sie sind viel schwieriger zu erkennen als Geruchsmischungen. Da die gewohnte Muster-Redundanz eines Gemischs fehlt, kann die Wahrnehmung und Bewertung eines Einzelstoffgeruchs je nach Konzentration stark variieren. So riecht Isoamylacetat in höheren Konzentrationen beispielsweise nach Lösungsmittel. Die Geruchsqualität kann sich abhängig von der Konzentration verändern. Indol hat in niedrigen Konzentrationen beispielsweise ein tiefes, samtiges, erdig-süßes Blütenaroma und kommt natürlich in Jasmin- oder Orangenblüten vor. Reines, hochkonzentriertes Indol riecht dagegen nach Fäkalien und Verwesung. Bei einem Einzelstoff setzt zudem die Adaptation (Gewöhnung) schneller ein als bei einem Gemisch (Chan et al., 2018).
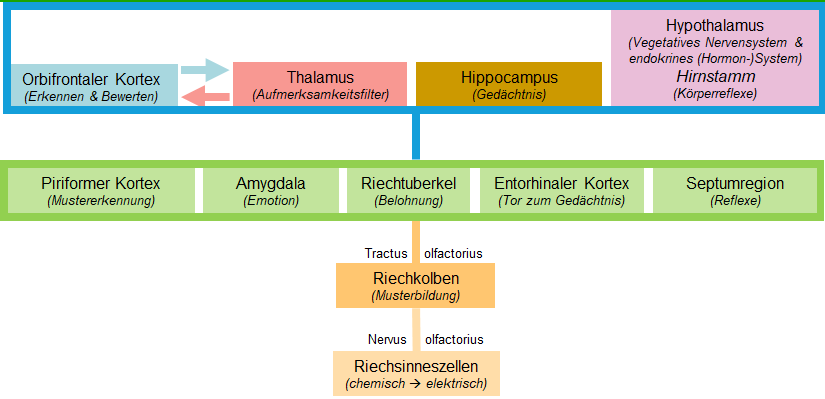
Hirnzentren
Zustandsgesteuerte Geruchsverarbeitung am Beispiel von Hunger und Sättigung:
Hunger: das Hormon Ghrelin binden an Rezeptoren des Tuberculum olfactorium, die Geruchsempfindlichkeit steigt, das dopaminerge Belohnungssystem wird aktiviert; Essensgerüche werden interessant und man versucht die Geruchsquelle zu finden.
Sättigung: das Hormon Leptin blockiert bzw. dämpft die zuvor im Tuberculum olfactorium aktivierten Rezeptoren, die Geruchsempfindlichkeit sinkt, (Essens)Gerüche und das Belohnungssystem werden entkoppelt, Essensgerüche werden uninteressant oder sogar abstoßend (Shanahan & Kahnt, 2022, Iravani et al., 2024).
Vom Piriformen Kortex aus gelangen die Geruchsinformationen direkt und indirekt über den Thalamus zum Orbitofrontalen Kortex, dem sekundären Riechzentrum. Auf dieser Ebene findet die bewusste Einordnung des Geruchs statt. So entsteht beispielsweise durch die multisensorische Integration von Informationen aus dem retronasalen Riechen, den trigeminalen Reizen aus dem Mund- und Nasenraum sowie der gustatorischen Wahrnehmung der Gesamteindruck von Aromen (Fjaeldstad et al., 2021).
Auf neuroanatomischer Ebene ist die Wahrnehmung von Gerüchen direkt mit dem Erleben von Emotionen und dem Abrufen von Erinnerungen verbunden. Alle drei Systeme stehen in reziproker Wechselwirkung zueinander. Die Ursache dafür liegt in der evolutionären Entwicklung des Gehirns. Es basiert auf der Weiterentwicklung jener molekularen Mechanismen der Chemosensorik, mit denen schon die ersten Einzeller ihre Umwelt analysiert haben (Jékely, 2021).
Der sogenannte „Proust-Effekt“ besagt, dass ein Geruch schlagartig alte emotionale Erinnerungen hervorrufen kann. Doch gibt es beim Menschen tatsächlich auch so etwas wie angeborene Warngerüche, auf die wir mit einem Abscheu-Reflex reagieren und der unseren Angst- oder Fluchtinstinkt aktiviert? In diesem Zusammenhang werden häufig Brandgeruch oder der Geruch von Verwesung, Fäkalien oder faulen Eiern genannt.
Geruchspräferenzen und -aversionen: angeboren oder gelernt?
Bei Säugetieren geht man davon aus, dass Geruchspräferenzen und -aversionen genetisch fest verankert sind. Diese werden über artspezifische chemische Substanzen, sogenannte Pheromone, spezielle Rezeptoren (Trace Amine-Associated Receptor - TAAR) und eventuell sogar in einem speziellen Organ, dem Vomeronasalorgan, gesteuert. Das Ergebnis sind starre, lernunabhängige Verhaltens und Hormonreaktionen. Beim Menschen ist es bislang nicht gelungen, entsprechende Chemikalien zu identifizieren, wodurch ein Geruch ein universelles, angeborenes Verhalten auslösen könnte (Wyatt, 2020; Doty, 2014).
Vielmehr geht man heute davon aus, dass die Wahrnehmung von Gerüchen auf der Neuroplastizität des assoziativen Lernens und des Gedächtnisses beruht. Die Prägung auf bestimmte Geruchsstoffe findet bereits im Mutterleib statt (Schaal et al., 2020). Das Riechsystem beginnt ab der 28. Schwangerschaftswoche zu funktionieren. Das Fruchtwasser enthält alle möglichen Geruchsstoffe, die durch die genetische, immunologische und körperliche Konstitution der Mutter reguliert, durch ihren Stress und ihren Gesundheitszustand moduliert sowie durch ihre Ernährungsgewohnheiten, die Verwendung von Kosmetika oder ihr Suchtverhalten beeinflusst werden. Die geruchsaktiven Substanzen gelangen an die Riechschleimhaut und aktiviert die Riechsinneszellen. Die elektrischen Impulse stimulieren die noch unreifen Nervenzellen im Riechkolben, im primären olfaktorischen Kortex, im Limbischen System und in den weiteren olfaktorischen Hirnarealen. Sie triggern das Wachstum und die Vernetzung der Nervenzellen in diesem reifenden neuronalen Netzwerk.
Auch nach der Geburt setzt sich die funktionelle Reifung des olfaktorischen Netzwerks fort. Im Vordergrund steht dabei die Differenzierung hemmender Schaltkreise im Riechkolben, was zur einer besseren Kontrastverstärkung und damit zu einem komplexeren Aktivierungsmuster führt. Parallel dazu intensivieren sich die Rückkopplungssignale aus dem olfaktorischen Cortex, dem limbischen System und weiteren olfaktorischen Hirnarealen zum Riechkolben hin. Mit ihrer Entwicklung verfeinert sich die Modulation der Geruchswahrnehmung im Kontext von Aufmerksamkeit, Erwartung, Emotion und Erinnerung zunehmend (Gregory et al., 2025; Kostka & Bitzenhofer, 2022).
Da die Nervenzellen in der Riechschleimhaut und im Riechkolben ein Leben lang neu gebildet werden und mit ihnen ihre synaptischen Verbindungen, findet im olfaktorischen neuronalen Netzwerk eine ständige Umstrukturierung statt. Diese Neuroplastizität ermöglicht eine dynamische Anpassung an eine sich verändernde Umwelt durch assoziatives Lernen und ist somit ein integraler Bestandteil des eigentlichen Wahrnehmungsprozesses (de Araujo et al., 2005; ).
Auch bei Säugetieren mehren sich die Hinweise darauf, dass Neuroplastizität und Lernprozesse angeborene Geruchspräferenzen und -aversion beeinflussen (Mallick et al., 2024; Nishizumi, 2025). So konnte beispielsweise eine Studie an Mäusen zeigen, dass die Exposition gegenüber dem
Geruch und Geruchsbelästigung
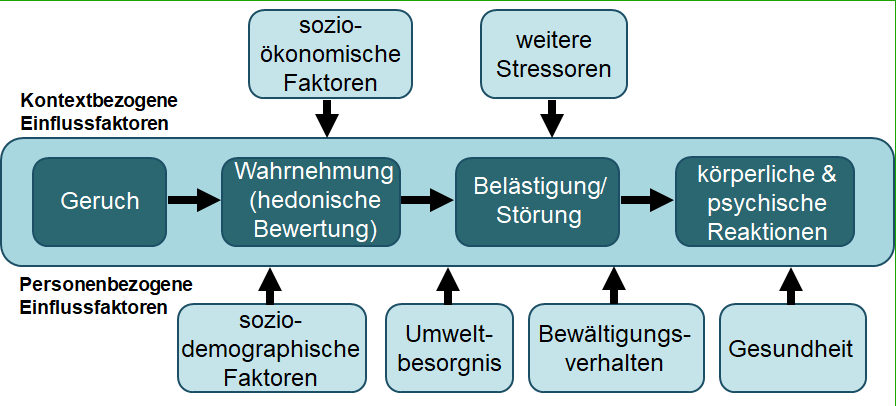
Auch unterhalb der Schwelle einer gesundheitsschädlichen Wirkung kann der Geruch zu einem Stressfaktor werden. In diesem Fall sind die geäußerten Symptome eine Folge der Geruchsbelästigungsreaktion. Sie werden nicht vom Geruch verursacht, sondern ihm als Ursache zugeschrieben („Attribution“) (Sucker et al., 2014).
Die Geruchsbelästigung ist definiert als eine negative Bewertung einer fremdbestimmten, durch unerwünschte Geruchsempfindungen geprägten Situation, die von einem Gefühl der Verärgerung über eine Behinderung erwünschter Aktivitäten (z. B. den betroffenen Raum nutzen) begleitet wird. Die Betroffenen klagen über Symptome wie z. B. Kopfschmerzen, Konzentrationsprobleme oder Schleimhautreizungen an Augen und Nase. Die Belästigungsreaktion gilt als Vorläufer von Befindlichkeitsstörungen, d. h. einer „Verschlechterung des psychischen, physischen und sozialen Wohlbefindens“ (Wiesmüller et al., 2013).
Wenn der Geruch mit Sorgen über mögliche Gesundheitsrisiken verbunden ist, findet keine Gewöhnung statt (Andersson et al., 2013). Stattdessen kommt es zu einer Sensibilisierung (Sucker et al., 2014). Diese geht mit einer Steigerung der Empfindlichkeit einher, d. h. die Wahrnehmungsschwelle für den Geruch sinkt (Pacharra et al., 2016), so dass immer weniger Moleküle ausreichen, um ihn eindeutig zu erkennen. Gleichzeitig verändert sich die Aufmerksamkeit für Gerüche: Man achtet stärker auf Gerüche als vorher. Die Erwartung negativer Auswirkungen auf die Gesundheit führt zu einer genaueren Überwachung der eigenen Körpersignale. Die Folge ist, dass auch unbedeutende Symptome, wie beispielsweise leichte Kopfschmerzen, die in einer anderen Situation vielleicht gar nicht bemerkt worden wären, im Sinne der Erwartung interpretiert werden.
Zudem lassen sich Gerüche besonders gut konditionieren. Konditionieren bedeutet „Reiz-Reaktions-Lernen“ und kann bewusst oder unbewusst erfolgen. Das zeitgleiche Auftreten eines Geruchs (z. B. Essensgeruch) und einer körperlichen Empfindung (z. B. Übelkeit aufgrund einer beginnenden Magen-Darm-Grippe) reicht aus, um eine starke, lang anhaltende Abneigung gegen dieses Gericht zu entwickeln. Dies kann auch geschehen, wenn beide Ereignisse zeitversetzt auftreten und das Gericht im Nachhinein als Ursache für die Übelkeit interpretiert wird. In der Folge kann der Essensgeruch anschließend selbst Übelkeit auslösen.
Geruch – Stress – Regulation
In Deutschland gibt es verschiedene Regelungen zu Geruch, wie beispielsweise die Geruchsimmissions-Richtlinie mit den entsprechenden VDI-Richtlinien, die jetzt Teil der TA-Luft geworden ist, die Geruchsleitwerte des AIR oder das AgBB-Schema zur gesundheitlichen Bewertung von Bauprodukten.
In Deutschland werden seit 2021 Arbeitsstoffe, die auch bei niedrigen Konzentrationen noch sehr geruchsintensiv sein können, mit einer entsprechenden Fußnote versehen: „Auch bei Einhaltung des MAK-Werts sind im Einzelfall ‚Geruchs-assoziierte‘ Symptome wie Übelkeit oder Kopfschmerzen nicht auszuschließen“ (DFG 2021, Abschn. I e).
In Kalifornien basiert der Luftqualitätsstandard (ambient air quality standard (AAQS)) für Schwefelwasserstoff (H2S), auf dem Endpunkt „Geruchsbelästigung“ nicht auf dem Endpunkt „adverse gesundheitliche Effekte“: 0,003 ppm (0,042 mg/m3) als 1-Stunden-Mittelwert. Ausgehend von der mittleren Geruchsschwelle für H2S in der Bevölkerung (ODT50: 0,008 ppm (0,012 mg/m3) wurde angenommen, dass bei einem 4-fachen dieses Werte 40 % der Bevölkerung belästigt ist (Shusterman, 1992).
Stark riechende Substanzen stehen im Verdacht, von der Arbeitsaufgabe abzulenken, was zu Fehlern und in der Folge zu Unfällen führen kann. Für die Occupational Safety and Health Administration (OSHA) – die Bundesbehörde für Arbeitssicherheit der Vereinigten Staaten – war das Grund genug, um für die drei Chemikalien Isopropylether, Phenylether und Vinyltoluol Grenzwerte aufgrund unerwünschter Geruchseffekte festzulegen (Sucker, 2016).
Literatur
Alladin, S. N. B., Berry, D., Anisimova, E., Judson, R., Whittaker, P., Dalmaijer, E. S. 2024. Children aged 5-13 years show adult-like disgust avoidance, but not proto-nausea. Brain Neurosci Adv. 8: 23982128241279616. DOI: 10.1177/23982128241279616.
Andersson, L., Claeson, A. S., Ledin, L., Wisting, F., Nordin, S. 2013. The influence of health-risk perception and distress on reactions to low-level chemical exposure. Front Psychol. 4: 816. DOI: 10.3389/fpsyg.2013.00816.
Bulsing, P. J., Smeets, M. A., Van den Hout, M. A. 2009. The implicit association between odors and illness. Chem Senses. 34(2):111-119. DOI: 10.1093/chemse/bjn062.
Campell, J. M. 1983. Ambient stressors. Environ & Behavior. 15 (3): 355-380. DOI: 10.1177/0013916583153005.
Chan, H. K., Hersperger, F., Marachlian, E., Smith, B. H., Locatelli, F., Szyszka, P., Nowotny T. 2018. Odorant mixtures elicit less variable and faster responses than pure odorants. PLoS Comput Biol. 14 (12): e1006536. DOI: 10.1371/journal.pcbi.1006536
Cleland, T. A., Linster, C. 2019. Central olfactory structures. Handb Clin Neurol. 164: 79-96. DOI: 10.1016/B978-0-444-63855-7.00006-X.
Croy, I., Ritschel, G., Kreßner-Kiel, D., Schäfer, L., Hummel, T., Havlíček, J., Sauter, J., Ehninger, G., Schmidt, A. H. 2020. Marriage does not relate to major histocompatibility complex: a genetic analysis based on 3691 couples. Proc Biol Sci. 287 (1936): 20201800. DOI: 10.1098/rspb.2020.1800.
Dalton, P. 1999.Cognitive influence on health symptoms from acute chemical exposure. Health Psychol. 18 (6): 579-559. DOI: 10.1037//0278-6133.18.6.579.
Dandine-Roulland, C., Laurent, R., Dall'Ara, I., Toupance, B., Chaix, R. 2019. Genomic evidence for MHC disassortative mating in humans. Proc Biol Sci. 286 (1899): 20182664. DOI: 10.1098/rspb.2018.2664.
Dasgupta, S., Stevens, C. F., Navlakha, S. 2017. A neural algorithm for a fundamental computing problem. Science. 358 (6364): 793-796. DOI: 10.1126/science.aam9868.
de Araujo, I. E., Rolls, E. T., Velazco, M. I., Margot, C., Cayeux, I. 2005. Cognitive modulation of olfactory processing. Neuron. 46 (4): 671-679. DOI: 10.1016/j.neuron.2005.04.021.
Deutsche Forschungsgemeinschaft (DFG). 2021. MAK- und BAT-Werte-Liste. Weinheim: WILEY-VCH Verlag, 2021. www.dfg.de/dfg_profil/gremien/senat/arbeitsstoffe/index.html.
Doty, R. L. 2014. Chapter 19: Human Pheromones: Do They Exist? In: Mucignat-Caretta, C. (Ed.). Neurobiology of Chemical Communication. Boca Raton (FL): CRC Press/Taylor & Francis. PMID: 24830029.
Doty, R. L. 2025. Odors as cognitive constructs: history of odor classification and attempts to map odor percepts to physical and chemical parameters. Chem Senses. 50: bjaf022. DOI: 10.1093/chemse/bjaf022.
Ekman, P. 1992. Are there basic emotions? Psychol Rev. 99 (3): 550-553. DOI: 10.1037/0033-295X.99.3.550.
Fjaeldstad, A. W., Stiller-Stut, F., Gleesborg, C., Kringelbach, M. L., Hummel, T., Fernandes, H. M. 2021. Validation of olfactory network based on brain structural connectivity and its association with olfactory test scores. Front. Syst. Neurosci. 15: 638053. DOI: 10.3389/fnsys.2021.638053.
Gregory, J. D., Kunkhyen, T., Sweat, S. C., Huang, J. S., Brechbill, T. R., Cheetham, C. E. J. 2025. New neurons in the postnatal olfactory system: Functions in the healthy and regenerating brain. Brain Sci. 15 (6): 597. DOI: 10.3390/brainsci15060597.
Havlíček, J., Murray, A. K., Saxton, T. K., & Roberts, S. C. 2010. Current issues in the study of androstenes in human chemosignaling. In G. Litwack (Ed.), Vitamins and hormones, Vol. 83: 47-81. Elsevier. DOI: 10.1016/S0083-6729(10)83003-1.
Havlíček, J., Winternitz, J., Roberts, S. C. 2020. Major histocompatibility complex-associated odour preferences and human mate choice: near and far horizons. Philos Trans R Soc Lond B Biol Sci.375 (1800): 20190260. DOI: 10.1098/rstb.2019.0260.
Herz, R S. 2009. Aromatherapy facts and fictions: a scientific analysis of olfactory effects on mood, physiology and behavior. Int J Neurosci. 119 (2): 263-290. DOI: 10.1080/00207450802333953.
Herz, R. S. 2025. Smell is Emotion. Brain Sci. 16 (1): 59. DOI: 10.3390/brainsci16010059.
Hirasawa, Y., Shirasu, M., Okamoto, M., Touhara, K. 2019. Subjective unpleasantness of malodors induces a stress response. Psychoneuroendocrinology. 106: 206-215. DOI: 10.1016/j.psyneuen.2019.03.018.
IFA Report “Innenraumarbeitsplätze – Vorgehensempfehlung für die Ermittlungen zum Arbeitsumfeld”. 2025. publikationen.dguv.de/forschung/ifa/ifa-report/5167/ifa-report-3/2025-innenraumarbeitsplaetze-vorgehensempfehlung-fuer-die-ermittlungen-zum-arbeitsumf
Iravani, B., Frasnelli, J., Arshamian, A., Lundström, J. N. 2024. Metabolic state modulates neural processing of odors in the human olfactory bulb. Biol Psychol. 187: 108770. DOI: 10.1016/j.biopsycho.2024.108770.
Jékely, G. 2021. The chemical brain hypothesis for the origin of nervous systems. Philos Trans R Soc Lond B Biol Sci. 376 (1821): 20190761. DOI: 10.1098/rstb.2019.0761
Kehl, M. S., Mackay, S., Ohla, K., Schneider, M., Borger, V., Surges, R., Spehr, M., Mormann, F. 2024. Single-neuron representations of odours in the human brain. Nature. 634 (8034): 626-634. DOI: 10.1038/s41586-024-08016-5.
Keller, A., Zhuang, H., Chi, Q., Vosshall, L. B., Matsunami, H. 2007Genetic variation in a human odorant receptor alters odour perception. Nature. 449 (7161): 468-472. DOI: 10.1038/nature06162.
Kirk-Smith, M. D., Booth, D. A. 1987. Chemoreception in human behaviour: Experimental analysis of the social effects of fragrances. Chem Senses. 12 (1): 159-166. DOI: 10.1093/chemse/12.1.159.
Kostka, J. K., Bitzenhofer, S. H. 2022. Postnatal development of centrifugal inputs to the olfactory bulb. Front. Neurosci. 16:815282. DOI: 10.3389/fnins.2022.815282.
Loos, H. M., Schaal, B., Pause, B. M., Smeets, M. A.M., Ferdenzi, C., Roberts, S. C., de Groot, J., Lübke, K.T., Croy, I., Freiherr, J., Bensafi, M., Hummel, T., Havlíček, J. 2025. Past, Present, and Future of Human Chemical Communication Research. Perspect Psychol Sci. 20 (1): 20-44. DOI: 10.1177/17456916231188147.
Mallick, A., Dacks, A. M., Gaudry, Q. 2024. Olfactory critical periods: How odor exposure shapes the developing brain in mice and flies. Biology (Basel). 13 (2): 94. DOI: 10.3390/biology13020094.
McClintock, M. 1971. Menstrual synchrony and suppression. Nature. 229: 244-245. DOI:10.1038/229244a0.
Mennella, J. A., Beauchamp, G. K. 1998. Early flavor experiences: Research update. Nutr Rev. 56 (7): 205-211. DOI: 10.1111/j.1753-4887.1998.tb01749.x.
Milinski, M. 2022. A review of suggested mechanisms of MHC odor signaling. Biology (Basel). 11 (8): 1187. DOI: 10.3390/biology11081187.
Nishizumi, H. 2025. How early olfactory experiences influence brain development in mice. Front Neural Circuits. 19: 1608270. DOI: 10.3389/fncir.2025.1608270.
Olsson, T., Joshi, A., Schaefer, M., Arshamian, A., Hummel, T., Lundström, J. N., Darki, F. 2026. Heritability of the olfactory bulb and its associated brain network. Neuroimage. 337: 122021. DOI: 10.1016/j.neuroimage.2026.122021.
Overath, P., Sturm, T., Rammensee, H. G. 2014. Of volatiles and peptides: in search for MHC-dependent olfactory signals in social communication. Cell Mol Life Sci. 71 (13): 2429-2442. DOI: 10.1007/s00018-014-1559-6.
Pacharra, M., Schäper, M., Kleinbeck, S., Blaszkewicz, M., Wolf, O. T., van Thriel, C. 2016. Stress lowers the detection threshold for foul-smelling 2-mercaptoethanol. Stress. 19 (1): 18-27. DOI: 10.3109/10253890.2015.1105212.
Qiu, Q., Wu, Y., Ma, L., Xu, W., Hills, M. Jr., Ramalingam, V., Yu, C. R. 2021. Acquisition of innate odor preference depends on spontaneous and experiential activities during critical period. Elife. 10: e60546. DOI: 10.7554/eLife.60546.
Roberts, S. C., Gosling, L. M., Carter, V., Petrie, M. 2008. MHC-correlated odour preferences in humans and the use of oral contraceptives. Proc Biol Sci. 275 (1652): 2715-2722. DOI: 10.1098/rspb.2008.0825.
Rottman, J. 2014. Evolution, development, and the emergence of disgust. Evol Psychol. 12 (2): 417-433. DOI: 10.1177/147470491401200209.
Schaal, B., Saxton, T. K., Loos, H., Soussignan, R., Durand, K. 2020. Olfaction scaffolds the developing human from neonate to adolescent and beyond. Philos Trans R Soc Lond B Biol Sci. 375 (1800): 20190261. DOI: 10.1098/rstb.2019.0261.
Schaefer, M., Iravani, B., Arshamian, A., Lundström, J. N. 2021. No evidence that hormonal contraceptives affect chemosensory perception. Iperception. 12 (1): 2041669520983339. DOI: 10.1177/2041669520983339.
Shanahan, L. K., Kahnt, T. 2022. On the state-dependent nature of odor perception. Front Neurosci. 16: 964742. DOI: 10.3389/fnins.2022.964742.
Shusterman D. 1992. Community health and odor pollution regulation. Am J Public Health. 82 (11): 1566-1567. DOI: 10.2105/ajph.82.11.1566.
Smith, T. D., Bhatnagar, K. P. 2019. Handb Clin Neurol. 164: 17-28. DOI: 10.1016/B978-0-444-63855-7.00002-2.
Steinheider, B., Winneke, G., Schlipköter, H.-W. (1993). Somatische und psychische Wirkungen intensiver Geruchsimmissionen - Eine Fallstudie aus der Substratherstellung für die Champignonzucht. Staub - Reinhalt Luft, 53, S. 435-431.
Sucker, K. 2016. Können Gerüche krank machen? Gefahrstoffe – Reinhalt Luft. 76 (10): 371-374.
Sucker, K., Bischoff, M., Franzen-Reuter, I., Görß, H.-J., Hellhammer, J., Kwiatkowski, K., Müller, F., Niebaum, N., Riesewick, H., Strotkötter, U. 2025. Ermittlung und Bewertung von ekelerregenden und Übelkeit auslösenden Gerüchen – die neue VDI-Richtlinie 3940 Blatt 6. Gefahrstoffe - Reinhalt. Luft. 85 (9-10): 275-281. DOI: 10.37544/0949-8036-2025-09-10-65. oder www.dguv.de/medien/ifa/de/pub/grl/pdf/grdl_09-10_2025_sucker.pdf
Sucker, K., Westphal, G., Bünger, J., Brüning ,T. 2014. Gute oder schlechte Luft? IPA-Journal 02/2014. www.ipa-dguv.de/ipa/publik/ipa-journale/index.jsp.
VDI 3883 Blatt 1:2015-09. Wirkung und Bewertung von Gerüchen - Erfassung der Geruchsbelästigung - Fragebogentechnik. www.dinmedia.de/de/technische-regel/vdi-3883-blatt-1/1270529
Wedekind, C. 2018. A predicted interaction between odour pleasantness and intensity provides evidence for major histocompatibility complex social signalling in women. Proc Biol Sci. 285 (1878): 20172714. DOI: 10.1098/rspb.2017.2714.
Wedekind, C., Seebeck, T., Bettens, F., Paepke, A. J. 1995. MHC-dependent mate preferences in humans. Proc Biol Sci. 260 (1359): 245-249. DOI: 10.1098/rspb.1995.0087.
Wiesmüller, G., Heinzow, B., Herr, C. E. W. 2013. Befindlichkeitsstörungen in Innenräumen. Umweltmed – Hygiene – Arbeitsmed. 18 (1): 30-34.
Winternitz, J., Abbate, J. L., Huchard, E., Havlíček, J., Garamszegi, L. Z. 2017. Patterns of MHC-dependent mate selection in humans and nonhuman primates: a meta-analysis. Mol Ecol. 26 (2): 668-688. DOI: 10.1111/mec.13920.
Winters, W., Devriese, S., Van Diest, I., Nemery, B., Veulemans, H., Eelen, P., Van de Woestijne, K., Van den Bergh, O. 2003. Media warnings about environmental pollution facilitate the acquisition in response to chemical substances. Psychosom Med, 65 (3): 332-338. DOI: 10.1097/01.psy.0000041468.75064.be.
Wyatt, T. D. 2020. Reproducible research into human chemical communication by cues and pheromones: learning from psychology's renaissance. Philos Trans R Soc Lond B Biol Sci. 375 (1800): 20190262. DOI: 10.1098/rstb.2019.0262.
Yang, Z., Schank, J. C. 2006. Women do not synchronize their menstrual cycles. Hum Nat. 17 (4): 433-447. DOI: 10.1007/s12110-006-1005-z.
Unterlagen
- 2026-sucker-geruch-und-stress.pdf (PDF, 1 MB)
Zitiervorschlag
Sucker, Kirsten (2026): Riechen, Fühlen, Reagieren: Die unsichtbare Verbindung von Geruch und Stress. Beitrag zum 14. Fachkongress 2026, Bremen, 24.09.2026. Hrsg. AGÖF. https://www.agoef.de/veranstaltungen/fachkongresse/14-fachkongress-2026/riechen-fuehlen-reagieren-die-unsichtbare-verbindung-von-geruch-und-stress